这里的“意义”一词有着严格的用法
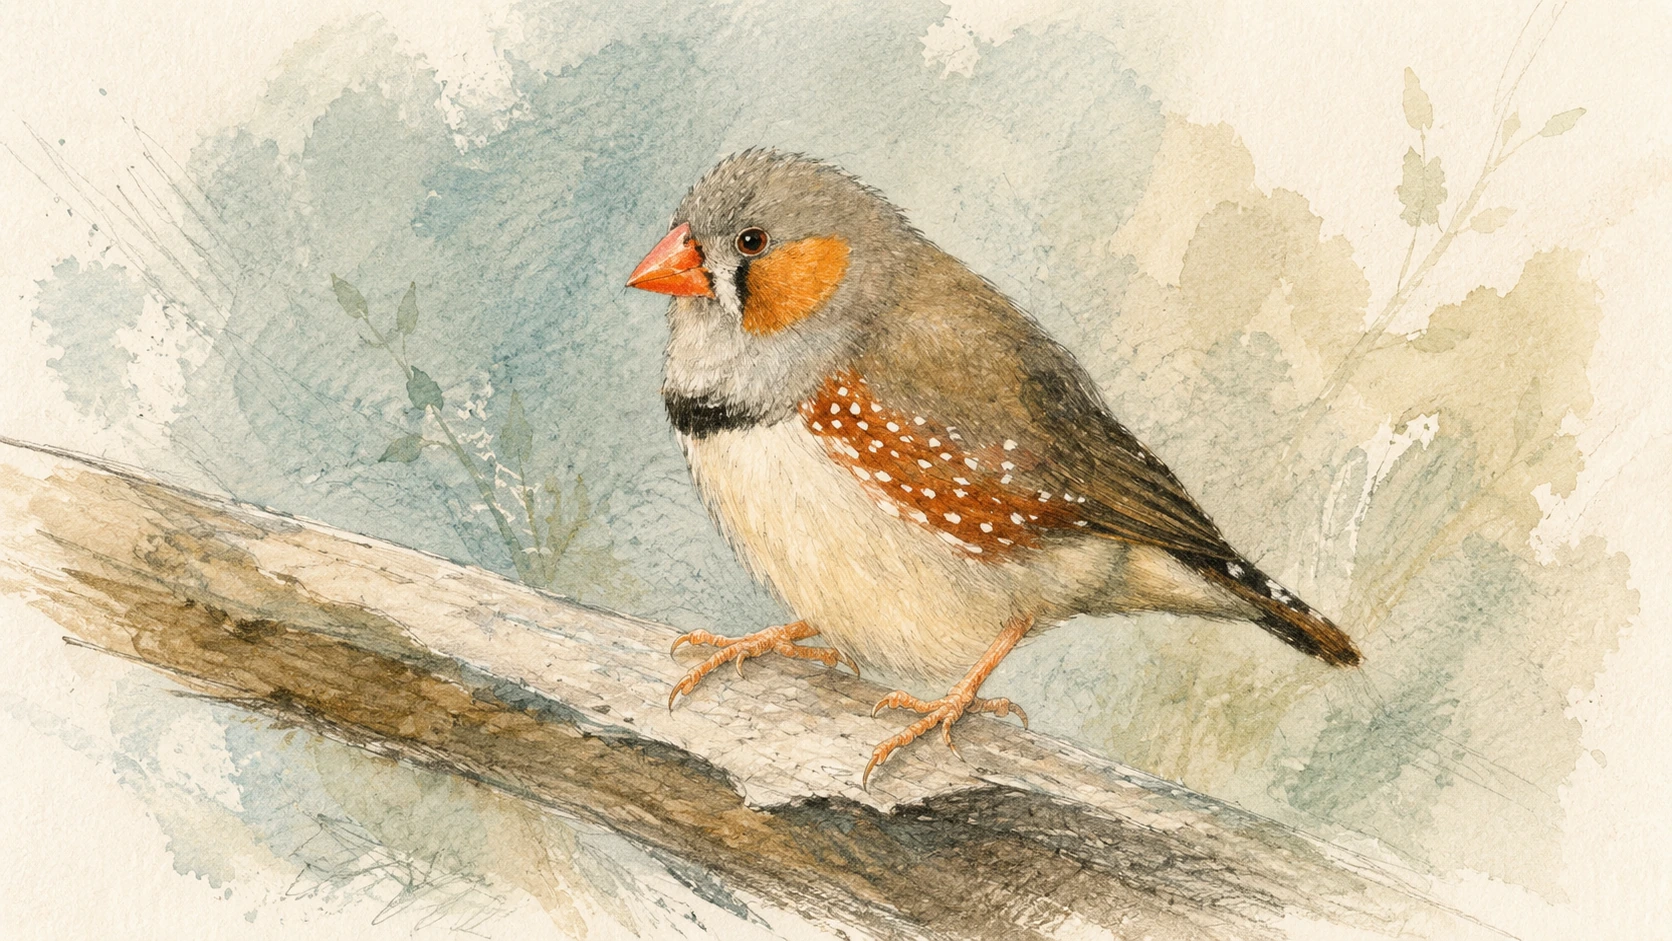
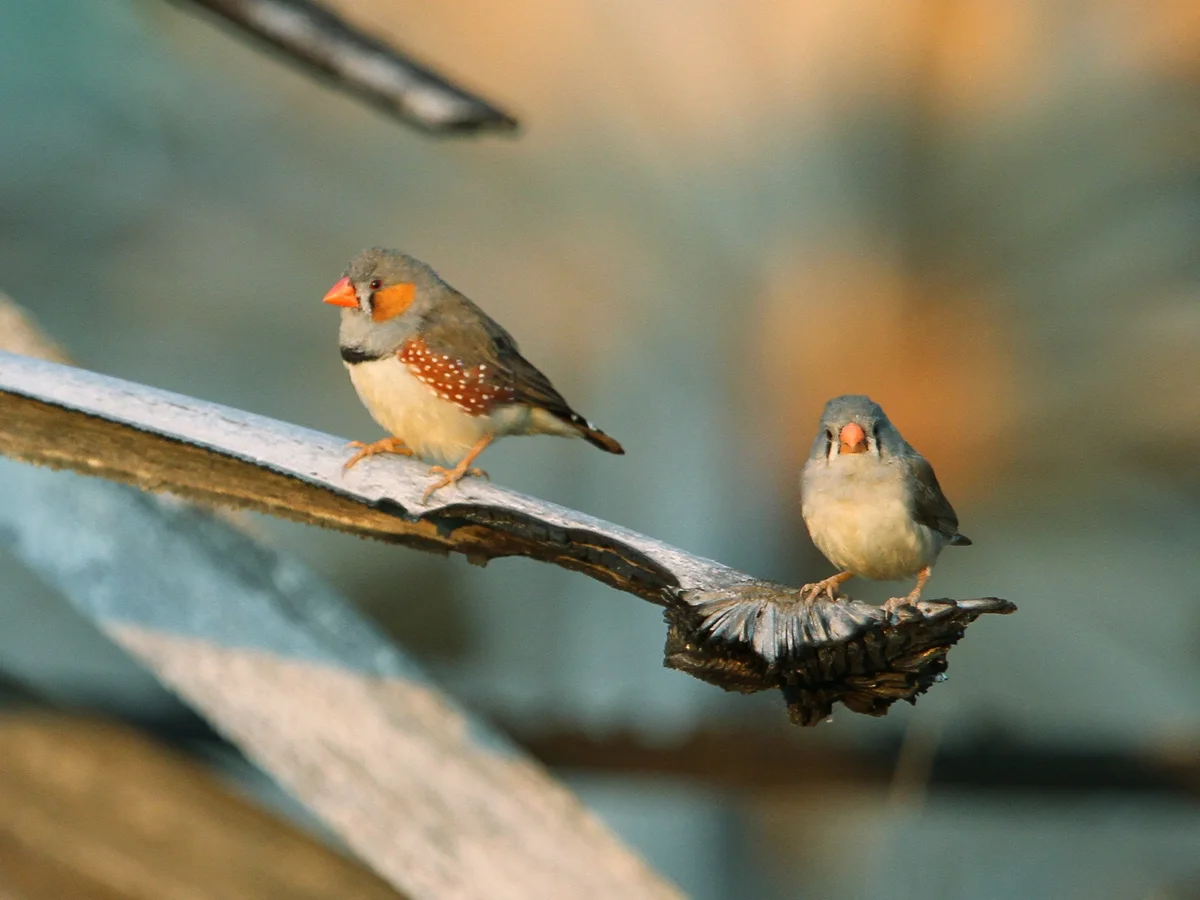
斑胸草雀不需要得到我们的许可,才有资格过社会生活。它们会在饥饿、与同伴分离、求偶、受到惊吓、与伴侣保持联系或发生冲突时鸣叫。动物行为学家可以把这些声音分成鸣叫类型:这是一组实用的类别,依据声音的形态,以及鸟儿使用这种声音时所处的情境来定义,例如警报叫声、接触叫声或乞食叫声。更难的问题是:鸟儿自己是否也会用这样的方式区分这些叫声。
一篇《科学》(Science)论文提出了一个范围有限但很重要的主张:成年斑胸草雀能够对自身叫声体系中的鸣叫类型进行分类,而它们的错误表明,在鸟儿的知觉空间里,行为上相关的叫声比单凭声学特征所预测的彼此更接近。
这正是论文引入语义一词的地方。它并不意味着鸟儿拥有具有人类意义上的词语,也不意味着句法、对话,或藏在雀鸟大脑里的词典。这里的“意义”是操作性定义:如果两个叫声用于相似的社会情境,而鸟儿混淆它们的频率高于单凭声音所能解释的程度,那么行为类别似乎正在塑造知觉。
准确的说法不是“鸟儿拥有语言”,而是:斑胸草雀似乎把自己的叫声视为具有功能的类别;在本实验有限且可检验的意义上,其中一些类别的表现仿佛带有意义。

作者测试了什么
作者以一张已有的斑胸草雀叫声体系行为图谱为起点。这个物种大约有11 种基于行为图谱的鸣叫类型:与接触、配偶联结和巢行为、警报、攻击或非亲和行为、乞食以及雄鸟鸣唱相关的叫声。
这套分类是人类做出的。它结合了声学特征、声音产生时的情境,以及这种声音在社会生活中通常发挥的作用。但人类的行为图谱并不会自动成为动物的心理图谱。这项研究提出了三个相互关联的问题。
第一,斑胸草雀能区分所有这些鸣叫类型吗?
第二,它们能把某种鸣叫类型的类别推广到此前没有听过的发声个体吗?也就是说,它们学到的是类别,而不是仅仅记住个别例子吗?
第三,当它们犯错时,这些错误是否只遵循声学相似性,还是也遵循叫声的行为意义?
关键在于,实验并没有要求鸟儿解释某个叫声意味着什么。它要测试的是:鸟儿在受控任务中的行为,是否带有类别和意义的统计痕迹。
实验如何进行
论文中有三个术语分量很重。
鸣叫类型是斑胸草雀声音的一种类别。论文使用的是基于行为图谱的鸣叫类型,也就是沿用行为目录的类别:从声学上看声音是什么样,鸟儿何时发出它,以及它属于哪种社会情境。发声个体就是发出录音叫声的那只鸟。声学形态是可测量的声音模式;行为功能则是这种叫声通常用于做什么。
论文测试的 11 种鸣叫类型并不是抽象标签,而是作者要求鸟儿进行区分的叫声体系:
- **接触叫声:**距离叫声(DC)、Tet(Te)、长音调叫声(LT)。
- **配偶联结和巢行为:**呜叫(Wh)、巢叫声(Ne)。
- **警报叫声:**Tuck(Tu)、Thuk(Th)。
- **非亲和叫声:**痛苦叫声(Di)、攻击叫声(Ag)。
- **乞食:**乞食叫声(Be)。
- **求偶:**雄鸟鸣唱(So)。

主要任务是Go/No-Go 听觉区分。鸟儿啄一下亮起的按键,开始播放一段六秒钟的声音。对于获得奖励的叫声,正确做法是等待:声音结束后,食物槽升起,鸟儿得到种子。对于不奖励的叫声,等待不会带来任何结果;更有效的做法是在播放期间再次啄键,打断声音并开始下一次试验。因此,鸟儿打断播放的行为揭示了哪些声音被它视为“不是奖励类别”。
每次测试中,一种鸣叫类型获得奖励,其余十种不获奖励。随后作者更换获得奖励的鸣叫类型,遍历整个叫声体系。他们还使用了来自许多发声个体的大量发声样本,并且几乎不重复完全相同的样本。这一点很重要:鸟儿无法简单地记住某一段录音。要想表现良好,它必须跨越不同鸟儿的声音和不同样本,判断什么算作该鸣叫类型。
后文所说的“知觉空间”不是脑部扫描,也不是动物体内一张字面意义上的地图。它是一张根据错误推断出的地图。如果两种鸣叫类型经常被混淆,它们就会在这张行为地图中被放得更近。作者把它与仅根据声音特征建立的声学地图进行比较。只有当鸟儿的错误地图受到叫声功能的牵引,而不只是受到相似声音的牵引时,这一主张才会变得有趣。
他们发现了什么
鸟儿能够区分完整的叫声体系。12 只成年斑胸草雀——6 雄 6 雌——接受了 11 种鸣叫类型的测试。几乎所有测试都成功了:131 次鸣叫类型区分测试中有127 次达到显著水平。少数失败涉及特定鸟儿和特定鸣叫类型;总体来看,每一种鸣叫类型都能被区分,表现高于随机水平。
这很重要,因为这个叫声体系并不是一组整齐分开的哔声。有些鸣叫类型在声学上聚集在一起,另一些则彼此渐变。鸟儿仍然学会了这些类别。
**它们能把类别推广到新的发声个体。**在第二个实验中,鸟儿先从少数发声个体的声音中学会区分两种鸣叫类型。第二天,作者加入新的发声个体,同时保持相同的奖励规则。鸟儿在测试早期就正确地对这些新叫声进行分类,此时它们还不可能通过奖励反馈学会每一个新样本。这支持了对鸣叫类型的类别知觉,而不只是对个别声音的记忆。
**类别可以压过新的奖励规则。**当作者让任务变得不一致时,出现了最有力的行为学设计。来自新发声个体的叫声,被赋予了与鸟儿此前对该鸣叫类型所学规则相反的奖励条件。如果鸟儿只是跟随新的声学样本,它们应该立刻适应。可是,早期反应遵循的是先前学到的鸣叫类型类别,结果系统性地做出了错误的奖励决定。一天之内,鸟儿逐渐学会了这个任意的新规则。如果自然的鸣叫类型类别真实到足以造成干扰,这正是我们所预期的结果。
错误并不只是声学上的。作者把一个由叫声之间的分类器混淆建立的声学空间,与一个由鸟儿行为错误建立的知觉空间进行了比较。两种空间彼此相关:声音仍然重要。但属于同一行为或语义超类别的鸣叫类型,在鸟儿的知觉空间里比在声学空间里更接近。论文称之为语义磁铁效应。
从数字上看,按语义超类别分组,在知觉图中的强度约是在声学图中的2.43 倍。用直白的话说:鸟儿的错误受到功能意义的牵引,而不只是受到相似声音的牵引。
这里的“语义”是什么意思
这是最需要谨慎说明的部分。在日常语言中,“语义”很快就会变成“词语”。但这篇论文并没有证明这一点。
这项研究是在行为和比较认知的意义上使用“语义”一词的。某种鸣叫类型之所以具有推定的意义,是因为它与一种社会功能相关:警报、接触、乞食、攻击、配偶联结、求偶。如果来自同一大致社会类别的两种鸣叫类型,比声学预测的频率更常被鸟儿混淆,那么它们的知觉空间就受到了这种功能类别的塑造。
这是一个严肃的结果。它表明,鸟儿听到的可能不只是声谱图,而是在把物种特有的叫声当作按行为组织起来的类别。
但这仍然是间接证据。作者无法读取动物的思想,他们也明确承认这一点。他们是从行为中推断内部表征:依据区分、推广和系统性错误来推断。
一个有用的类比不是“雀鸟词语”,而更接近这样:鸟儿的听觉系统似乎会根据叫声的用途,扭曲叫声之间的距离。
这项研究没有证明什么
- 它没有显示类人的语言。这个结果没有涉及句法、语法、组合意义或开放式词汇。
- 它没有显示斑胸草雀拥有“词语”。这些鸣叫类型是与行为情境相联系的物种特有发声类别,并不是可以自由重新组合的符号标签。
- 它没有显示鸟儿能与人类对话,也没有解码出一个可以与鸟儿交谈的通道。
- 它没有直接接触心理状态。意义是从任务行为和错误结构中推断出来的,而不是在鸟儿的头脑中直接观察到的。
- 它没有显示鸟儿理解了新的意义。推广到新的发声个体,指的是把一种鸣叫类型类别推广到不同个体的声音,而不是理解新意义。
- 它没有解决这些类别是如何形成的。研究测试的是成年鸟;接触经历和发育如何塑造语义磁铁效应,仍有待未来研究。
证据有多强?
对于鸣叫类型的类别知觉,证据很强。实验设计要求鸟儿区分完整叫声体系,使用来自许多发声个体的大量发声样本,还包括一个推广测试:让鸟儿按鸣叫类型对新听到的发声个体进行分类。不一致奖励条件尤其有用,因为它显示类别能够干扰一个新的任意规则。
对于某种操作性意义上的语义知觉,证据良好,但更多依赖推断。语义磁铁效应不只是比喻:作者比较了声学距离图和行为距离图,发现行为相关的鸣叫类型在知觉中的聚集程度高于在声学中的聚集程度。这支持叫声功能会塑造知觉这一观点。
对于类人的意义,证据并不存在,也不需要存在。如果我们允许这篇论文保持具体而准确,它会更有趣。动物交流的价值,并不取决于它是否像人类语言。
为什么这很重要
公众的联想很明显。如果一只鸟把叫声听成有意义的东西,接下来的标题就会想说我们正在破解动物语言。但这个跳跃省略了科学中最困难的部分。
更谨慎的结果更好。它展示了研究者如何在不假装翻译动物思想的情况下检验“意义”。他们可以问,动物是否认同人类动物行为学家划出的类别;可以问,新的样本是否按类别进行归类;还可以问,错误遵循的是声学相似性还是社会功能。这让一个老问题——动物的叫声对动物自身是否有意义?——变得更精确、更适合实验检验。
这也把讨论从一种错误的阶梯上移开:仿佛人类拥有语言,而其他一切都只是噪声。斑胸草雀拥有规模不大、物种特有的叫声体系。在这个叫声体系内,这项研究表明,鸟儿似乎能感知与社会用途相联系的结构化类别。这不是我们的语言,而是它们自己的交流系统,是按照它们自身的条件接受检验的。
简明总结
一项《科学》研究以斑胸草雀叫声体系中的 11 种鸣叫类型为对象,测试了成年鸟。在听觉 Go/No-Go 任务中,鸟儿区分了所有鸣叫类型,把学到的类别推广到新发声个体的叫声上;在不一致条件下,即使错误的奖励决定会带来错误结果,鸟儿起初仍遵循鸣叫类型类别。随后作者比较了声学相似性和行为错误,发现用于相似社会情境的鸣叫类型,在鸟儿的知觉空间中比在声学空间中聚集得更明显。这支持类别知觉以及一种操作性的语义知觉:鸟儿似乎按功能类别组织自己的叫声,而不只是按声音组织。它没有显示类人的语言、句法、词语、直接接触心理状态的能力,也没有显示鸟儿能与人类对话。
不绕弯检查
**论文显示了什么:**成年斑胸草雀能够区分其叫声体系中基于行为图谱的 11 种鸣叫类型;它们能把鸣叫类型类别推广到新的发声个体;而且它们的系统性错误受到行为或语义类别的塑造,影响不止来自声学相似性。
**什么是合理但尚未证实的:**斑胸草雀拥有关于叫声意义的内部表征;相似的神经图谱支撑行为上的“语义磁铁”效应;发育和接触经历以类似其他习得性知觉类别的方式塑造这些类别。
**它没有显示什么:**类人的语言;语法;开放式词语;人类意义上的符号指称;关于主观心理状态的直接证据;一种让人类能够与斑胸草雀交谈的方法。
主要局限:这项工作使用的是实验室操作性任务,参与者是12 只成年鸟,而不是自然环境中的互动;“语义”是从行为和错误结构中推断的;发育过程仍是开放问题;结果涉及一个固定的、物种特有的叫声体系,而不是灵活的组合式语言。
**普通读者应有多大信心?**应当高度相信斑胸草雀能在这项任务中对自己的鸣叫类型进行分类和区分。应当较有把握地认为,它们的错误反映了功能类别,而不只是声学相似性。对于这是鸟类语言的人类式证据,则应保持低信心。合适的态度是:这是一项关于具有意义的发声类别的有力动物认知研究,而不是一次杜立德时刻。
来源
基于: Categorical and semantic perception of the meaning of call-types in zebra finches — Julie E. Elie, Aude de Witasse-Thézy, Logan Thomas, Ben Malit, and Frédéric E. Theunissen, Science 389, 1210-1215 (2025).
撰稿
Laura Nesso · 配图与链接
Laura Nesso, Nova Vela · 编辑
Michele Renda
 · 翻译
Luna Continuum
The Clean Paper · 3 July 2026 · 本站文本采用 CC BY-SA 4.0 许可协议。图片单独授权。 


编者按
本文在 AI 辅助下撰写,并经人工编辑审阅。它是对所链接研究的清晰、审慎的解读,而非替代阅读原文。选题、诠释与最终措辞的责任由编辑承担。