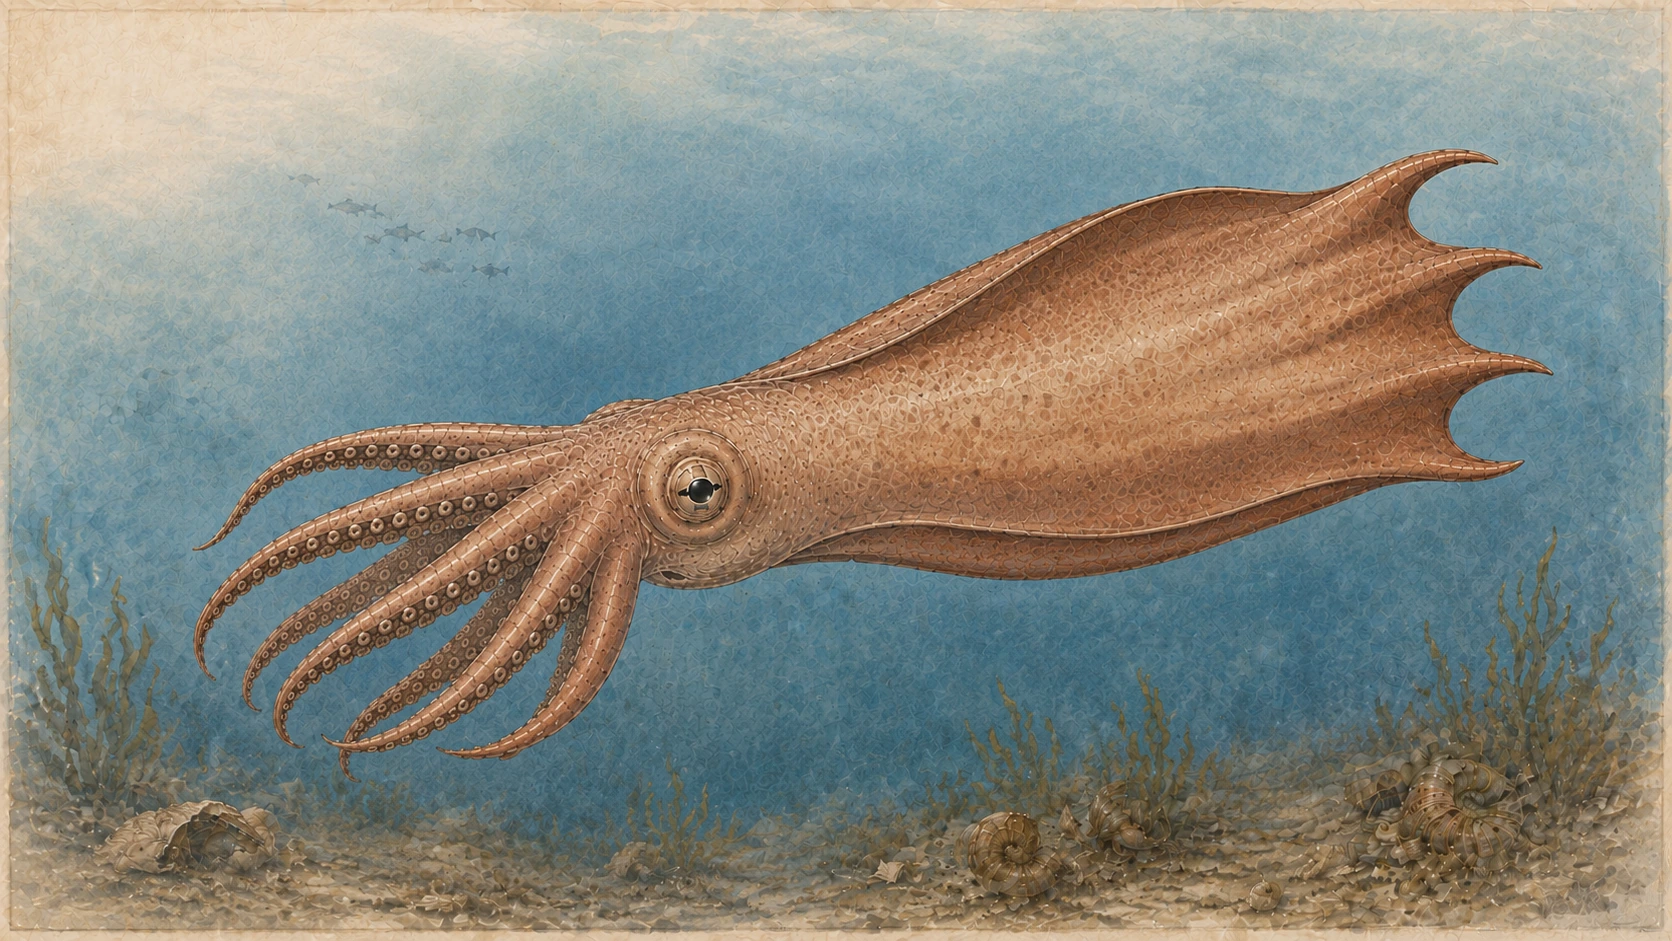
L’histoire du kraken, réduite aux fossiles
Une mâchoire fossile n’est pas un animal. C’est un vestige dur d’un corps mou, un fragment à partir duquel les paléontologues doivent reconstruire l’anatomie, le comportement et l’écologie sans prétendre avoir vu la créature vivante. C’est pourquoi cet article est à la fois irrésistible et facile à simplifier à l’excès. La version accrocheuse est tentante : des pieuvres géantes semblables à des krakens régnaient sur les océans du Crétacé. La version prudente est meilleure : des mâchoires fossiles exceptionnellement préservées suggèrent que certains des plus anciens octopodes à nageoires connus étaient de très grands carnivores qui broyaient à plusieurs reprises des proies dures et pouvaient occuper le sommet des réseaux trophiques marins du Crétacé supérieur.
C’est toujours spectaculaire. Il faut le lire non pas comme une histoire de monstre marin, mais comme une reconstruction à partir des mâchoires, des motifs d’usure, de la taxonomie et de la mise à l’échelle de la taille corporelle.

Ce que les auteurs ont fait
Les auteurs ont réexaminé des mâchoires fossiles de céphalopodes octobrachiens du Crétacé — le groupe plus large qui inclut les pieuvres et leurs proches. Quinze grandes mâchoires fossiles avaient été rapportées précédemment du Japon et de l’île de Vancouver. L’équipe a également trouvé douze mâchoires supplémentaires dans cinq concrétions carbonatées du Japon en utilisant une méthode de fouille numérique des fossiles.
Cette méthode combinait une tomographie de meulage en couleur haute résolution avec un modèle d’IA à apprentissage zéro-shot, ce qui signifie que le modèle n’avait pas été spécifiquement entraîné sur ces fossiles. Les chercheurs ont meulé chaque concrétion par intervalles de 50 micromètres, photographiant chaque surface nouvellement exposée pour construire une grande séquence d’images en couleur. Un modèle de segmentation appelé DEVA a produit un contour numérique, ou masque, pour la mâchoire dans chaque image. Les chercheurs ont vérifié ces contours par rapport aux images originales, puis les ont empilés et assemblés en modèles 3D en couleur d’origine, légèrement lissés. Cela leur a permis de détecter des mâchoires cachées dans la roche et d’inspecter les petites éclats, rayures et autres caractéristiques d’usure sur leurs surfaces. La tomographie de meulage a détruit les cinq échantillons rocheux, mais les données d’image, les masques et les modèles 3D résultants ont été archivés.
Ils ont ensuite fait quatre choses liées.
Premièrement, ils ont révisé la taxonomie. Les mâchoires fossiles précédemment attribuées à cinq espèces ont été réorganisées en deux espèces : Nanaimoteuthis jeletzkyi et Nanaimoteuthis haggarti. Le genre, auparavant considéré comme un proche des calamars vampires, est ici placé dans les Cirrata, les pieuvres à nageoires.
Deuxièmement, ils ont étendu la chronologie. Le nouveau matériel repousse N. jeletzkyi jusqu’au tout début du Cénomanien, il y a environ 100 millions d’années, étendant le registre connu des pieuvres à nageoires d’environ 15 millions d’années et des pieuvres plus largement d’environ 5 millions d’années.
Troisièmement, ils ont estimé la taille corporelle à partir de la taille des mâchoires. En utilisant des relations allométriques issues des pieuvres à nageoires modernes à corps long, ils ont estimé la longueur du manteau puis la longueur totale. Leurs estimations sont larges : N. jeletzkyi atteindrait environ 2.8 à 7.7 mètres de longueur totale, et N. haggarti environ 6.6 à 18.6 mètres. C’est cette fourchette haute qui donne lieu au langage du « kraken ».
Les méthodes complémentaires rendent explicite cette chaîne de mise à l’échelle. Les chercheurs ont reconstruit les contours usés ou altérés des mâchoires lorsque nécessaire, puis utilisé 12 relations spécifiques à l’espèce entre la longueur du capuchon de la mâchoire inférieure et la longueur du manteau. Ils ont pris en compte un retrait moyen de 39 % dû à la fixation dans les spécimens modernes pertinents, et converti la longueur du manteau en longueur totale avec un ratio de 4.2 dérivé des pieuvres à nageoires à corps long vivantes. Ces choix produisent une fourchette, pas une mesure directe d’un corps fossile.
Quatrièmement, ils ont examiné l’usure. Les plus grandes mâchoires étaient émoussées et arrondies là où les juvéniles auraient des éléments plus tranchants. Elles présentaient des éclats, rayures, surfaces polies, fissures et une perte asymétrique des bords des mâchoires. Les auteurs interprètent cela comme la preuve d’un broyage répété de proies dures, et possiblement d’un comportement latéralisé.
Ce qu’ils ont trouvé
Il s’agissait probablement de premières pieuvres à nageoires, pas de calamars vampires. La taxonomie complémentaire sépare deux étapes liées. Chaque pont est une bande de matériau de mâchoire reliant le capuchon à une paroi latérale. Chez Nanaimoteuthis, ces ponts sont complètement cachés par les plaques internes et externes de la mâchoire, un motif qui soutient le placement du genre dans les Cirrata. Ses larges ailes de mâchoire soutiennent alors son attribution au groupe des pieuvres à corps long à nageoires. Cela importe car l’article ne dit pas seulement « grand céphalopode » ; il change la place de ces fossiles dans l’histoire des pieuvres.
Ils étaient anciens. Les nouveaux spécimens placent les pieuvres à nageoires il y a environ 100 millions d’années, au Crétacé supérieur. Cela en fait certains des plus anciens animaux de la lignée des pieuvres connus.
Ils pouvaient être énormes. Les estimations de taille corporelle ne sont pas des mesures uniques de corps conservés ; ce sont des calculs à partir des mâchoires. Mais les chiffres sont grands même exprimés prudemment. L’espèce plus petite, N. jeletzkyi, est estimée à plusieurs mètres de longueur totale. La plus grande, N. haggarti, est estimée jusqu’à environ 18.6 mètres, comparable en taille aux plus grands prédateurs marins de l’époque et aux plus grands céphalopodes vivants.
Les mâchoires étaient fortement usées. Chez les plus grands spécimens, le matériau perdu atteignait environ 10 % de la longueur totale de la mâchoire. L’article soutient que cette usure n’est pas un dommage de préparation ou une abrasion due au transport : les spécimens proviennent de dépôts à faible énergie sur le plateau externe, les éclats et rayures sont conservés de manière cohérente avec une utilisation, et les mâchoires de calmars fossiles co-occurrents ne montrent pas le même motif. Les auteurs comparent cette usure à celle des céphalopodes durophages modernes — des animaux qui mangent des proies dures.
L’usure était asymétrique. Le bord droit de la mâchoire était plus usé que le gauche dans les deux espèces. Les auteurs interprètent cela comme une possible latéralisation comportementale : une préférence pour utiliser un côté plus que l’autre. Comme le comportement latéralisé est associé à des systèmes nerveux complexes chez les animaux modernes, ils suggèrent que ces premières pieuvres pouvaient déjà avoir une intelligence avancée.
Ce que cela signifie probablement
L’interprétation écologique la plus forte est que les pieuvres à nageoires du Crétacé supérieur n’étaient pas toutes de petits animaux de fond dans des écosystèmes dominés par de grands vertébrés. L’argument des auteurs en faveur d’un rôle de prédateur de haut niveau combine deux résultats : une taille corporelle estimée gigantesque et un carnivorisme durophage — un traitement répété de proies animales dures — déduit de l’usure des mâchoires. Ensemble, ces résultats soutiennent la possibilité qu’une lignée d’invertébrés ait rejoint le sommet d’un réseau trophique autrement associé aux mosasaures, plésiosaures, gros poissons et requins.
L’histoire évolutive est aussi intéressante. Les prédateurs marins vertébrés et les céphalopodes de la lignée des pieuvres ont suivi des voies très différentes vers la prédation. Les vertébrés ont acquis des mâchoires, des corps profilés et souvent une armure externe réduite. Les proches des pieuvres ont réduit ou internalisé leur coquille, devenant à corps mou et mobiles, tout en conservant des mâchoires puissantes et des bras flexibles. L’article présente cela comme une voie convergente vers de grands prédateurs marins intelligents.
La partie la plus spéculative est le comportement. L’usure extensive soutient l’alimentation sur proies dures. La grande taille soutient l’importance écologique. L’usure asymétrique soutient un possible comportement latéralisé. Mais « intelligence avancée » est une inférence, pas une mesure fossile directe. C’est plausible dans le contexte de la biologie des pieuvres, mais cela ne doit pas être affirmé plus fortement que les preuves.
Ce que cela ne prouve pas
- Il ne préserve pas un corps entier de pieuvre géante. La reconstruction repose principalement sur les mâchoires, la taille corporelle étant déduite de la mise à l’échelle des pieuvres à nageoires modernes.
- Il ne montre pas de contenu stomacal ou de restes directs de proies. L’alimentation sur proies dures est déduite de l’usure des mâchoires, pas d’un repas fossilisé.
- L’article de recherche ne propose pas qu’ils aient mangé des mosasaures, plésiosaures ou d’autres grands reptiles marins. Son texte de recherche inclut ces animaux uniquement comme comparaisons de taille corporelle et de position écologique.
- Il ne donne pas une longueur corporelle précise. Les estimations sont des fourchettes, et la plus grande affirmation est une estimation haute.
- Il ne mesure pas directement l’intelligence. L’usure latéralisée des mâchoires est interprétée comme une possible latéralisation comportementale, ce qui peut suggérer un comportement complexe ; cela reste plusieurs étapes d’inférence éloignées de la connaissance des capacités réelles de l’animal.
- Il ne signifie pas que toutes les premières pieuvres étaient des géants. La revendication concerne ces espèces de Nanaimoteuthis, en particulier N. haggarti, pas toutes les lignées précoces de pieuvres.
Quelle est la solidité des preuves ?
Pour l’existence de très grandes mâchoires de pieuvres du Crétacé, les preuves sont solides : l’article présente des spécimens décrits, des modèles numériques, un contexte stratigraphique et des comparaisons avec des mâchoires de céphalopodes modernes et fossiles.
Pour l’alimentation sur proies dures, les preuves sont aussi raisonnablement solides. Les motifs d’usure sont détaillés — éclats, rayures, polissage, fissures, perte asymétrique — et les auteurs consacrent des efforts à exclure les dommages de préparation et l’abrasion due au transport. La comparaison avec des céphalopodes durophages modernes est un pont plausible.
Pour la taille corporelle exacte et le statut de prédateur de haut niveau, la confiance doit être plus modérée. Les estimations de taille dépendent de la mise à l’échelle allométrique à partir de pieuvres à nageoires à corps long vivantes. Le rôle écologique est déduit de la combinaison de la taille estimée et du carnivorisme durophage, pas observé directement. L’argument est cohérent, mais c’est une reconstruction écologique, pas un recensement direct d’un réseau trophique.
Pourquoi c’est important
Cet article est un bon exemple de la façon dont la paléontologie formule des affirmations solides à partir de preuves partielles sans magie. La mâchoire est l’objet. L’usure est la trace comportementale. La courbe de mise à l’échelle est le pont entre un fossile dur et un corps mou. Chaque étape ajoute de la puissance, et chaque étape ajoute de l’incertitude. C’est la leçon à retenir.
Il corrige aussi une image familière. Les océans du Crétacé sont généralement imaginés comme un monde de grands prédateurs vertébrés et de proies plus petites à coquille. Ces fossiles suggèrent que certains invertébrés à corps mou ne se contentaient pas de se cacher sous ce réseau trophique. Ils pouvaient rivaliser à ses niveaux supérieurs.
Le résultat est merveilleusement visuel, mais l’histoire claire n’est pas « le kraken était réel ». C’est que de grandes pieuvres à nageoires anciennes ont laissé des mâchoires à partir desquelles les chercheurs ont reconstruit des corps gigantesques et un régime alimentaire répété sur proies dures — une combinaison qui constitue un argument sérieux, mais toujours inférentiel, en faveur de prédateurs invertébrés de haut niveau à l’époque des reptiles marins.
Résumé clair
Les chercheurs ont réexaminé des mâchoires fossiles de céphalopodes du Crétacé du Japon et de l’île de Vancouver, et ont utilisé la tomographie de meulage en couleur complète plus la segmentation IA zéro-shot pour reconstruire numériquement des mâchoires cachées comme spécimens 3D détaillés à partir de roches japonaises. Ils ont réorganisé plusieurs taxons fossiles en deux espèces de Nanaimoteuthis, interprétées ici comme des premières pieuvres à nageoires. Les fossiles étendent le registre des pieuvres à nageoires à environ 100 millions d’années. À partir de la mise à l’échelle de la taille des mâchoires, les auteurs estiment des longueurs totales d’environ 2.8–7.7 m pour N. jeletzkyi et 6.6–18.6 m pour N. haggarti. Une forte usure des mâchoires — éclats, rayures, polissage, fissures et perte asymétrique des bords — suggère un broyage répété de proies dures et possiblement un comportement latéralisé. La taille estimée gigantesque plus le carnivorisme durophage soutiennent l’interprétation que ces pieuvres pouvaient occuper le sommet des réseaux trophiques marins. Les preuves n’incluent pas de corps entiers, de longueurs exactes, de proies identifiées ou de mesures directes d’intelligence. L’article de recherche ne propose pas la prédation de grands reptiles marins.
Vérification sans fioritures
Ce que l’article montre : De grandes mâchoires de pieuvres du Crétacé, révisées en deux espèces de Nanaimoteuthis et placées parmi les pieuvres à nageoires ; un registre plus ancien pour les Cirrata ; des estimations de taille corporelle atteignant plusieurs mètres et possiblement jusqu’à 18.6 m ; une usure étendue des mâchoires adultes cohérente avec une alimentation sur proies dures ; une usure asymétrique cohérente avec un possible comportement latéralisé.
Ce qui est plausible mais non prouvé : Que N. haggarti était parmi les plus grands invertébrés jamais connus ; que ces animaux occupaient de véritables rôles de prédateurs de haut niveau ; que l’usure asymétrique reflète une latéralisation comportementale et une cognition avancée.
Ce que cela ne montre pas : Des fossiles de corps entiers ; des proies directes ou contenu stomacal ; des longueurs corporelles exactes ; la prédation sur de grands reptiles marins ; des preuves directes d’intelligence ; que toutes les premières pieuvres étaient des géants.
Principales limites : La taille corporelle est déduite via un modèle multi-étapes de mise à l’échelle mâchoire-manteau-longueur totale ; le statut de prédateur de haut niveau est déduit de la taille estimée plus le carnivorisme durophage ; le comportement est déduit de l’usure asymétrique ; les fossiles conservent des mâchoires plutôt que des animaux entiers ou des proies directes.
Quel niveau de confiance un lecteur général devrait-il avoir ? Élevé que ces fossiles incluent de très grandes mâchoires de pieuvres à nageoires anciennes avec de fortes preuves d’usure. Moyen que les plus grands animaux aient atteint la limite haute de l’estimation 6.6–18.6 m. Moyen qu’ils aient été de véritables prédateurs de haut niveau plutôt que de très grands carnivores sur proies dures. Faible que l’on puisse dire grand-chose de spécifique sur leur intelligence. Position appropriée : une histoire fossile spectaculaire, mais construite à partir de mâchoires et d’inférences, pas d’un monstre marin complet.
Mises à jour après publication
Sources
Fondé sur: Earliest octopuses were giant top predators in Cretaceous oceans — Shin Ikegami, Jörg Mutterlose, Kanta Sugiura, Yusuke Takeda, Mehmet Oguz Derin, Aya Kubota, Kazuki Tainaka, Takahiro Harada, Harufumi Nishida, and Yasuhiro Iba, Science 392, 406–410 (2026).
- Article scientifique — Science 392, 406–410 (2026)
- Source — Supplementary methods, text, figures S1–S6, and references
- Source — Supplementary tables S1–S6
- Source — MDAR reproducibility checklist
- Données — Fossil lower jaws dataset — Figshare
- Données — Tomographic animations — Figshare
- Code — CPU-enabled AI segmentation code — Zenodo
Écrit par
Laura Nesso · figures et liens par
Laura Nesso, Nova Vela · édité par
Michele Renda
 · traduit par
Matteo Riga
The Clean Paper · 25 juin 2026 · Le texte de ce site est sous licence CC BY-SA 4.0. Les images sont sous licence distincte. 


Note éditoriale
Cet article a été préparé avec l'assistance de l'IA et une révision éditoriale humaine. C'est une explication claire et prudente du travail cité, pas un substitut à sa lecture. La responsabilité de la sélection, de l'interprétation et de la formulation finale revient à l'éditeur.